Revista Veterinaria. 2026; 37
https://doi.org/10.30972/vet.3719635
Artículo Original
Mazepa C.I. 1,2

Salgado C.R. 1,2
Porrini L.P. 3,4
Maggi M.D. 3,4
1 Instituto de Botánica del Nordeste (UNNE-CONICET), Corrientes, Argentina.
2 Universidad Nacional del Nordeste (UNNE), Corrientes, Argentina.
3 Centro de Investigación en Abejas Sociales (CIAS). Instituto de Investigaciones en Producción, Sanidad y Ambiente (IIPROSAM). Universidad Nacional de Mar del Plata (UNMdP), Buenos Aires, Argentina.
4 CONICET, Mar del Plata, Buenos Aires, Argentina.
Resumen
La abeja melífera (Apis mellifera) presenta una estructura genética compleja en América del Sur, resultado de la hibridación entre linajes europeos y africanos. En el norte argentino, particularmente en la ecorregión del Chaco Húmedo, los estudios disponibles sugieren un predominio de ancestría africana, aunque la caracterización genética a escala regional y su dinámica temporal permanecen escasamente documentadas. El objetivo de este estudio fue caracterizar la composición genética de poblaciones de A. mellifera en apiarios productivos del Chaco Húmedo mediante la identificación de linajes y subespecies utilizando morfometría geométrica alar, y analizar su variación temporal y diversidad intra-apiario, con el fin de generar información regional relevante para el manejo y monitoreo apícola. El estudio se desarrolló en dos apiarios, ubicados en las provincias de Chaco (Unidad Demostrativa Apícola, UDA) y Corrientes (Escuela de la Familia Agrícola, EFA). Se realizaron ocho muestreos estacionales durante 2024 y 2025, colectando abejas obreras adultas de cinco colmenas por apiario. Se extrajo el ala anterior derecha, sobre la cual se digitalizaron 19 puntos anatómicos de referencia, y se realizó análisis morfométrico. Los resultados indicaron que en ambos apiarios la menor distancia morfométrica correspondió de forma consistente a A. m. scutellata, seguida por A. m. intermissa y A. m. caucasica, evidenciando un predominio del morfotipo africano a lo largo de todo el período analizado. Se registraron fluctuaciones estacionales leves en las distancias de Mahalanobis, así como una disminución interanual en la distancia hacia A. m. scutellata entre 2024 y 2025, sugiriendo una mayor afinidad africana en el segundo año. Estos resultados son consistentes con la ubicación del área de estudio dentro de la denominada zona de saturación de abejas africanizadas y aportan evidencia práctica sobre la dinámica temporal de la hibridación en una ecorregión apícola de relevancia productiva para la Argentina.
Palabras clave: estructura poblacional, abeja melífera, africanización, híbridos, A. m. scutellata, norte argentino.
Abstract:The honey bee (Apis mellifera) exhibits a complex genetic structure in South America resulting from hybridization between European and African lineages. In northern Argentina, particularly in the Humid Chaco ecoregion, available studies suggest a predominance of African ancestry, although regional characterization and its temporal dynamics remain poorly documented. This study aimed to characterize the population composition of A. mellifera in productive apiaries in the Humid Chaco by identifying lineages and subspecies using wing geometric morphometrics, and to assess temporal variation and intra-apiary diversity, thereby providing regionally relevant information for beekeeping management and monitoring. The study was conducted at two apiaries located in Chaco Province (Apicultural Demonstration Unit, UDA) and Corrientes Province (Agricultural Family School, EFA). Eight seasonal samplings were conducted during 2024 and 2025, collecting adult worker bees from five colonies per apiary. The right forewing was removed, and 19 anatomical landmarks were digitized for morphometric analysis. In both apiaries, the shortest Mahalanobis distance consistently corresponded to A. m. scutellata, followed by A. m. intermissa and A. m. caucasica, indicating a predominance of the African morphotype throughout the study period. Slight seasonal fluctuations in Mahalanobis distances were observed, together with an interannual decrease in the distance to A. m. scutellata between 2024 and 2025, suggesting greater African affinity in the second year. These findings are consistent with the location of the study area within the so-called Africanised bee saturation zone and provide practical evidence insights into the temporal dynamics of hybridisation in an apicultural ecoregion of major productive importance in Argentina.
Keywords: population structure, honey bee, Africanisation, hybrids, A. m. scutellata, northern Argentina.
La abeja melífera (Apis mellifera) no constituye una población uniforme, sino que está integrada por distintos linajes y subespecies con diferencias genéticas bien definidas, producto de su origen evolutivo y de los procesos históricos de dispersión y selección a los que ha sido sometida (De Jong 1996). Actualmente, se reconocen más de 26 subespecies, agrupadas en cuatro grandes linajes evolutivos: A (África), C (Europa Oriental), M (Europa Occidental) y O (Cercano Oriente y Asia Occidental), cada uno con una historia biogeográfica y adaptativa particular (Sheppard et al. 1997, Sheppard y Meixner 2003, Meixner et al. 2011, 2013). Estas diferencias genéticas se traducen en variaciones significativas en aspectos como la adaptabilidad climática, el comportamiento defensivo, la productividad y la respuesta frente a enfermedades y parásitos, incluyendo Varroa destructor (Salamanca Grosso 2009, Guzmán-Novoa et al. 2011, Agra 2018).
Desde una perspectiva ecológica, Odum y Barrett (2006) señalan que las especies tienden a desarrollar poblaciones localmente adaptadas, denominadas ecotipos, cuyas características reflejan las presiones selectivas impuestas por el ambiente. En el caso de A. mellifera, la hibridación entre linajes y subespecies, junto con la acción de la selección natural en ambientes particulares, ha dado lugar a poblaciones con combinaciones genéticas únicas, capaces de explotar eficientemente los recursos locales y de responder diferencialmente a estresores sanitarios (Francoy et al. 2008, Guzmán-Novoa et al. 2011, 2024, Meixner et al. 2013). Comprender la composición genética de las poblaciones de A. mellifera en diferentes regiones resulta relevante no solo desde una perspectiva evolutiva, sino también para el manejo apícola, ya que los distintos linajes presentan diferencias en rasgos productivos, comportamiento defensivo y resistencia a enfermedades y parásitos.
Las primeras colonias de A. mellifera fueron introducidas al continente americano durante la colonización española en el siglo XVI, principalmente en Centroamérica, y correspondían a linajes de origen europeo (De Jaime Lorén 2003, Requier 2019). Entre las primeras subespecies introducidas desde Europa se encontraban A. m. mellifera, A. m. iberica, (Linaje M), y luego A. m. ligustica y A. m. carnica (Linaje C). Sin embargo, en 1956, se introdujo en Brasil la subespecie A. m. scutellata (Linaje A). Estas poblaciones se dispersaron rápidamente a través de las regiones tropicales y subtropicales del continente (Kerr 1967, Kent 1988). Este proceso dio lugar a un fenómeno de hibridación conocido como proceso de Africanización (Kerr 1967), generando un escenario genético complejo caracterizado por la coexistencia de poblaciones de origen europeo, africano y zonas de transición con distintos grados de hibridación (Kerr et al. 1982, Francoy et al. 2008, Agra 2018, Porrini et al. 2020, Litvinoff et al. 2023).
En Argentina, los estudios orientados a identificar la procedencia y composición genética de las abejas melíferas comenzaron a mediados del siglo XX. De Santis y Cornejo (1969) evaluaron la defensividad como indicador indirecto del origen genético, mientras que Kerr et al. (1982) incorporaron caracteres morfométricos para discriminar entre linajes europeos y africanos. Posteriormente, Sheppard et al. (1991) realizaron los primeros trabajos de caracterización molecular mediante análisis de ADN mitocondrial. Estudios más recientes basados en morfometría alar y marcadores moleculares indican que las provincias del norte argentino, particularmente Formosa, Chaco y Corrientes, presentan una mayor proporción de ancestría africana (Agra 2018, Porrini et al. 2020). Esta distribución se encuentra delimitada aproximadamente por la isoterma anual de 16 °C o el paralelo 32° S (Kerr et al. 1982), lo que define una región donde predominan linajes de origen africano (Sheppard et al. 1991, Calfee et al. 2020).
La ecorregión del Chaco Húmedo abarca sectores del norte argentino comprendidos aproximadamente entre los 24° y 30° S, incluyendo el este de las provincias de Chaco y Formosa, el norte de Santa Fe, el noreste de Santiago del Estero y sectores del noroeste de Corrientes. Esta región se caracteriza por un clima subtropical, con inviernos suaves y veranos cálidos, precipitaciones anuales entre 900 y 1.300 mm concentradas principalmente en primavera y verano, y temperaturas medias anuales entre 20 y 23 °C. La vegetación típica combina bosques abiertos, sabanas y pastizales, generando una marcada heterogeneidad ambiental que favorece una alta diversidad de recursos florales durante gran parte del año. Estas condiciones promueven el desarrollo continuo de las colonias de A. mellifera (Morello et al. 2012). En países como Argentina, donde la apicultura se desarrolla en una amplia diversidad de ambientes, la distribución de los linajes de A. mellifera no es homogénea y responde tanto a factores históricos como ecológicos (Agra 2018, Porrini et al. 2020, Litvinoff et al. 2023).
Los antecedentes disponibles sobre la caracterización genética de A. mellifera en esta región provienen principalmente de estudios de alcance nacional que incluyeron provincias del norte argentino dentro de sus diseños de muestreo, por lo que aportan información parcial o indirecta sobre el área específica del Chaco Húmedo. Entre ellos, Agra et al. (2018) relevaron colonias en las provincias de Chaco, Corrientes y Formosa, mientras que Porrini et al. (2020) confirmaron el predominio de morfotipos africanizados en el norte del país, aunque sin profundizar en la estructura genética a escala regional. En consecuencia, la ausencia de estudios específicamente focalizados en el Chaco Húmedo constituye un vacío relevante en el conocimiento de la diversidad genética de A. mellifera en una de las ecorregiones apícolas más importantes del país. Considerando que esta ecorregión se ubica dentro de la zona de saturación de poblaciones africanizadas en Argentina, la caracterización genética de las poblaciones locales resulta clave para comprender la dinámica regional de la hibridación.
A pesar del avance en la caracterización genética de las poblaciones de A. mellifera en Argentina, los estudios orientados a evaluar la dinámica temporal de la composición híbrida siguen siendo escasos. La mayoría de las investigaciones disponibles corresponden a relevamientos puntuales que no permiten analizar cambios interanuales en la frecuencia de haplotipos ni en la estructura genética poblacional (Agra et al. 2018, Porrini et al. 2020). Algunos trabajos han comenzado a explorar esta dimensión temporal de manera indirecta. Por ejemplo, Galindo-Cardona et al. (2020) monitorearon áreas de congregación de zánganos durante dos temporadas consecutivas en Tucumán y Buenos Aires, mientras que Genchi García et al. (2018) compararon la frecuencia de linajes africanos y europeos entre períodos de muestreo separados por varios años en la provincia de Buenos Aires. Sin embargo, la región norte del país, particularmente la ecorregión del Chaco Húmedo, continúa siendo un área prácticamente inexplorada en lo que respecta a estudios sobre variación temporal en la dinámica de hibridación, lo que representa una oportunidad relevante para profundizar el conocimiento sobre la estructura genética de las poblaciones apícolas regionales.
La morfometría geométrica alar se ha consolidado como una herramienta robusta y ampliamente utilizada para la identificación de linajes de A. mellifera, permitiendo discriminar entre poblaciones de origen europeo y africano mediante el análisis de la forma del ala (Francoy et al. 2008, Oleksa y Tofilski 2015). En este contexto, se plantea como hipótesis que las poblaciones de A. mellifera en apiarios del Chaco Húmedo presentan un predominio del linaje africano, el cual puede ser identificado mediante morfometría geométrica alar.
El objetivo de este estudio fue identificar la composición genética de poblaciones de A. mellifera en apiarios productivos del Chaco Húmedo mediante la identificación de linajes y subespecies utilizando morfometría geométrica alar, y analizar su variación temporal y diversidad intra-apiario, con el fin de generar información regional relevante para el manejo y monitoreo apícola.
Área de estudio. El estudio se desarrolló en dos apiarios localizados en la región noreste de la República Argentina, dentro de la ecorregión del Chaco Húmedo. Uno de los apiarios se ubica en la localidad de Colonia Benítez, provincia del Chaco (27°17′ S; 58°56′ O), correspondiente a la Unidad Demostrativa Apícola (UDA). El segundo apiario se localiza en el departamento San Cosme, provincia de Corrientes (27°22′ S; 58°30′ O), perteneciente a la Escuela de la Familia Agrícola (EFA). Ambos apiarios se encuentran dentro de la subregión del Chaco de Bosques y Cañada (Morello et al. 2012). El ambiente se caracteriza por paisajes de llanura con relieve suavemente ondulado, donde se desarrollan bosques chaqueños abiertos, sabanas arboladas y pastizales, intercalados con esteros, cañadas y sectores periódicamente inundables asociados a la dinámica hídrica regional.
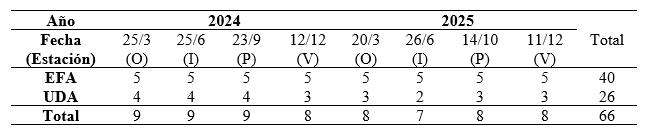
Toma de muestra. Por cada apiario se seleccionaron cinco colmenas en producción, homogéneas y bien pobladas (9 a 10 cuadros con abejas). El número de colmenas muestreadas varió en el apiario UDA debido a fuga o muerte de colonias. Los muestreos se realizaron de manera sistematizada, por estaciones, durante dos años consecutivos (2024-2025), siendo en total ocho muestreos por apiario. En cada muestreo se colectaron unas 300 abejas obreras adultas directamente de los cuadros centrales de cría (Tabla 1). Las muestras se conservaron en alcohol etílico al 70%, correctamente rotuladas (apiario, colmena y fecha), y se mantuvieron a temperatura ambiente hasta su procesamiento en laboratorio.
Montaje y digitalización. En laboratorio, se tomaron 10 obreras por cada muestra colectada para el análisis morfométrico. A cada individuo se le extrajo el ala anterior derecha, debido a su uso estandarizado en estudios de morfometría geométrica en A. mellifera (Francoy et al. 2006). Las alas fueron montadas sobre portaobjetos y posteriormente fotografiadas utilizando la cámara digital de Smartphone (Motorola Moto G42, sensor de 50 MP) acoplada al ocular del microscopio estereoscópico Leica EZ4 mediante adaptador, manteniendo condiciones constantes de aumento, enfoque e iluminación para la totalidad de las muestras, garantizando un formato digital de alta resolución.
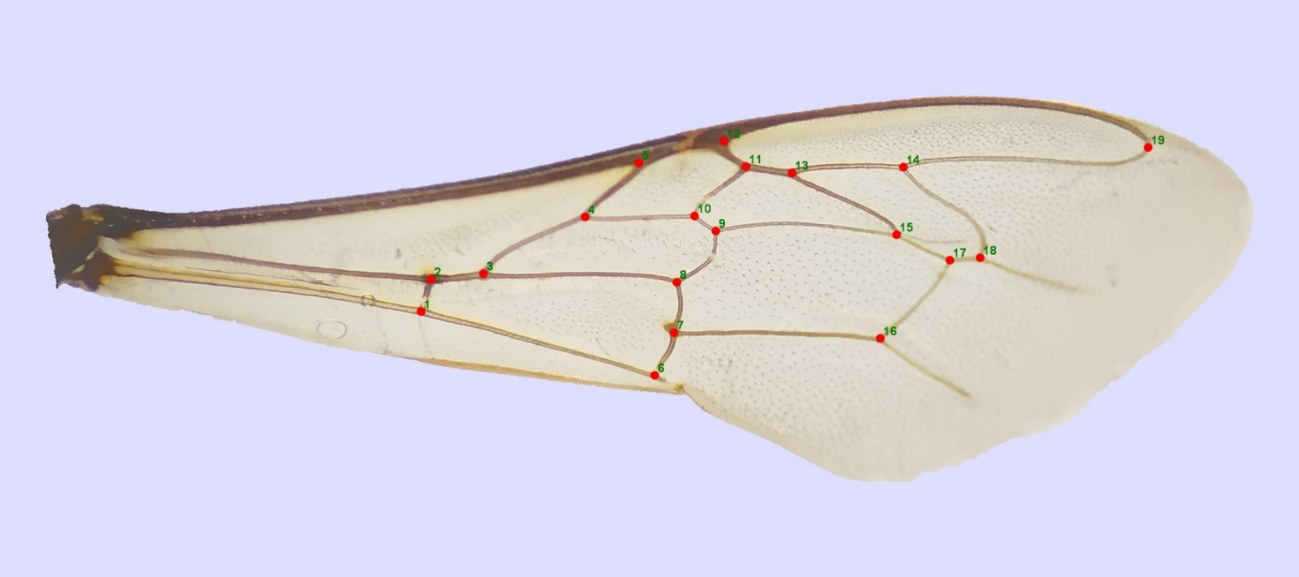
Las imágenes fueron procesadas mediante software tpsDig (Rohlf 2015), en el cual se marcaron 19 puntos anatómicos de referencia -PAR- (Francoy et al. 2008) correspondientes a intersecciones de venación alar (Figura 1), generando un archivo de coordenadas (X,Y) para cada individuo analizado, que luego fueron integrados mediante el software tpsUtil (Rohlf 2015), facilitando su procesamiento comparativo.
Estos puntos (PAR) representan estructuras anatómicas homologables que permiten capturar con alta precisión la geometría de la venación alar, ya que el ala es un órgano que contiene suficiente información morfológica para distinguir diferentes grupos de abejas (Meixner et al. 2013, Charistos et al. 2014), por tanto, el análisis de estos puntos facilita la comparación entre grupos y permite su utilización como herramienta para la caracterización genética.
Procesamiento y análisis morfométrico. El análisis comparativo se llevó a cabo mediante el software libre MorphoJ (Klingenberg 2011). El uso de este software permite confrontar las configuraciones alares obtenidas de las colonias en estudio con configuraciones de referencia, a través de un banco de imágenes de alas de diferentes subespecies: A. m. carnica, A. m. caucasica, A. m. iberiensis, A. m. intermissa, A. m. ligustica, A. m. mellifera y A. m. scutellata (Porrini et al. 2020, Litvinoff et al. 2023).
Las configuraciones de coordenadas fueron sometidas a superposición generalizada por método Procrustes, con el fin de eliminar la variación asociada a tamaño, posición y orientación, conservando únicamente la información de forma. La variación morfológica fue explorada mediante análisis de componentes principales (PCA) y comparaciones entre grupos a través de distancias de Mahalanobis y análisis discriminante, permitiendo evaluar afinidades morfométricas y patrones de diferenciación entre poblaciones (Mitteroecker y Gunz 2009, González et al. 2022).
El análisis comparativo se llevó a cabo considerando las siete subespecies disponibles en el banco de referencia. No obstante, con fines de representación gráfica, se seleccionaron únicamente las tres subespecies con menor distancia morfométrica respecto a las muestras analizadas, a fin de optimizar la claridad interpretativa y evitar la sobrecarga visual de los gráficos.
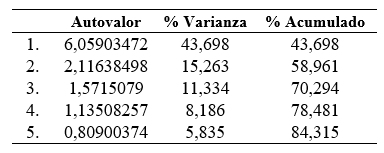
Análisis canónico discriminante. Este análisis mostró que las dos primeras variables canónicas explicaron el 58,96% de la variación entre grupos, mientras que las tres primeras concentraron el 70,29%. La primera variable canónica (CV1) explicó el 43,7% de la variación total, constituyendo el principal eje de diferenciación morfológica entre las poblaciones analizadas (Tabla 2).
El test global multivariado basado en permutaciones (10.000 iteraciones) evidenció diferencias significativas entre grupos (Goodall’s F = 20,36; p<0,0001; Pillai’s trace = 4,89; p<0,0001).
Análisis de distancias de Mahalanobis.
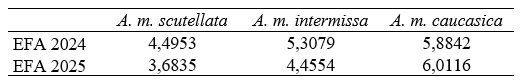
Variación Interanual. Durante 2024 el apiario EFA presentó una afinidad morfométrica predominantemente asociada al linaje africano. En todos los muestreos, la menor distancia de Mahalanobis correspondió a A. m. scutellata, seguida por A. m. intermissa y A. m. caucasica.
En 2025 se mantiene el mismo orden de afinidades (A. m. scutellata, A. m. intermissa, A. m. caucasica), pero con un cambio importante; las distancias hacia A. m. scutellata disminuyen notablemente. Esto implica que hubo una mayor proximidad morfométrica al linaje africano, un incremento de la homogeneidad poblacional y una reducción relativa del componente europeo, evidenciada por un aumento en la distancia morfométrica respecto a A. m. caucasica (Tabla 3).
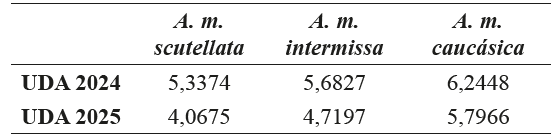
En el apiario UDA, al igual que en EFA, la menor distancia Mahalanobis corresponde de forma sistemática a A. m. scutellata, seguida por A. m. intermissa y luego A. m. caucasica. La población presenta una estructura híbrida, con predominio africano, pero con una mayor dispersión morfométrica que en EFA, lo que sugiere una africanización menos homogénea durante 2024.
Durante 2025 se observa una disminución general de las distancias hacia A. m. scutellata, especialmente en los últimos muestreos, manteniéndose el mismo orden de afinidad. Esta reducción de distancias indica un aumento de la afinidad africanizada, mayor proximidad al patrón morfométrico de A. m. scutellata y persistencia de hibridación con A. m. intermissa (Tabla 4).
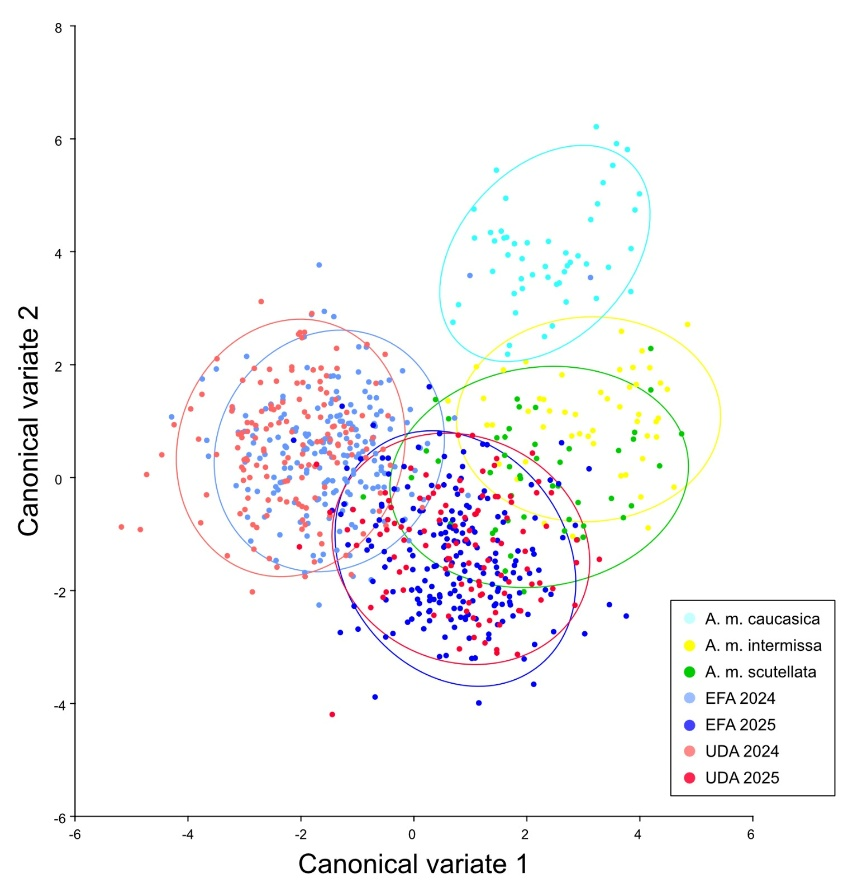
Las elipses de dispersión del gráfico de variables canónicas -CVA- (Figura 2), reflejan visualmente los patrones morfométricos descritos previamente en las Tablas 3 y 4. Se observa que las muestras correspondientes a ambos apiarios (EFA y UDA) durante 2024 y 2025 se agrupan en el sector del gráfico más próximo al grupo de referencia de A. m. scutellata. Esta proximidad indica una mayor afinidad morfométrica con esta subespecie, coherente con las menores distancias de Mahalanobis registradas en los análisis comparativos. La posición relativa de las elipses correspondientes a 2025 muestra un desplazamiento leve hacia el sector ocupado por A. m. scutellata, acompañado de una menor dispersión en comparación con algunos conjuntos de 2024. Este patrón gráfico es consistente con la disminución de las distancias morfométricas hacia A. m. scutellata observada en las tablas, y refuerza la interpretación de una mayor proximidad al patrón morfométrico africano en los muestreos.
Dinámica estacional. En ambos apiarios, A. m. scutellata presenta consistentemente las menores distancias, indicando la mayor afinidad morfométrica a lo largo de todo el período analizado. En el apiario EFA, sus valores muestran una disminución progresiva desde marzo de 2024 hasta septiembre del mismo año, un incremento hacia diciembre y una reducción en marzo de 2025, seguida de fluctuaciones durante los muestreos posteriores (Figura 3). En el apiario UDA, la tendencia general muestra valores relativamente estables durante 2024, una disminución en marzo de 2025 y variaciones posteriores en los muestreos subsiguientes (Figura 3). La representación gráfica se restringió a A. m. scutellata, A. m. intermissa y A. m. caucasica, por ser las subespecies más próximas a las poblaciones evaluadas.
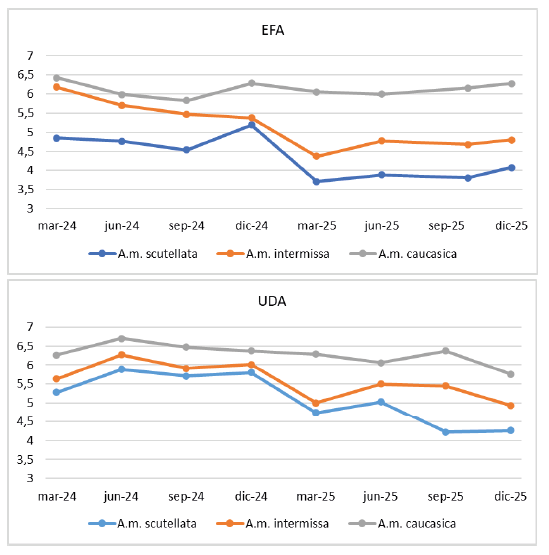
En segundo lugar, A. m. intermissa registra distancias intermedias durante todo el período. En el apiario EFA se observa un patrón de comportamiento similar a A. m. scutellata, una disminución gradual desde marzo hasta septiembre de 2024, seguida de un aumento hacia diciembre y una caída pronunciada en marzo de 2025, con posteriores fluctuaciones. En el apiario UDA, los valores aumentan entre marzo y junio de 2024, se mantienen relativamente cercanos hasta diciembre y posteriormente disminuyen en marzo de 2025, con variaciones menores en los muestreos siguientes.
Por último, A. m. caucasica presenta de manera constante las mayores distancias respecto a las poblaciones estudiadas, evidenciando la menor afinidad morfométrica entre las subespecies consideradas. En ambos apiarios, sus valores se mantienen relativamente elevados durante todo el período, con oscilaciones entre los distintos momentos de muestreo y sin variaciones abruptas en la tendencia general.
Los resultados obtenidos en este estudio evidencian un predominio del morfotipo africano en las poblaciones analizadas del Chaco Húmedo, particularmente asociado a A. m. scutellata. Este patrón coincide con lo reportado previamente para el norte de Argentina y otras regiones de Sudamérica, donde distintos estudios han documentado una marcada influencia genética africana en poblaciones manejadas y ferales. En este sentido, Sheppard et al. (1991) demostraron tempranamente la existencia de flujo génico entre poblaciones de origen africano y europeo en Argentina, evidenciando que las poblaciones locales presentan una estructura genética caracterizada por la dominancia de linajes africanos con distintos grados de introgresión europea. Investigaciones posteriores realizadas en el país (Agra 2018, Porrini et al. 2020, Mazepa et al. 2023, Genchi García 2025) han confirmado este patrón para el norte argentino, describiendo poblaciones ampliamente africanizadas en ambientes subtropicales.
Este predominio de componentes africanos también puede interpretarse en el marco de la expansión geográfica de las abejas africanizadas en América del Sur (De Jong 1996, Moposita et al. 2020). Desde su introducción en Brasil a mediados del siglo XX (Kerr 1967, Kent 1988), las abejas derivadas de A. m. scutellata se dispersaron rápidamente por gran parte del continente americano (De Jong 1996), generando hibridación de las poblaciones combinando los linajes africanos y europeos, dando lugar a lo que se conoce como “africanización” (Agra 2018). En este contexto, diversos autores han propuesto la existencia de límites latitudinales para la colonización estable de abejas africanizadas, los modelos tempranos desarrollados por Kerr et al. (1982) y Taylor y Spivak (1984), confirmados posteriormente por Sheppard (1992), sugieren que la colonización permanente de abejas africanizadas podría estabilizarse alrededor de los 32° de latitud sur, mientras que una zona adicional de colonización temporal podría extenderse hasta aproximadamente los 35° S, donde las colonias podrían sobrevivir durante la temporada productiva, pero presentan dificultades para atravesar el invierno. En concordancia con estas postulaciones, Agra (2018) reporta la ausencia de mitotipos africanos más allá de los 32° S, lo que sugiere que dicha latitud podría representar un límite natural para la persistencia estable de linajes africanos en el país. Porrini et al. (2020) confirmaron la presencia de poblaciones africanizadas distribuidas a lo largo de un gradiente latitudinal progresivo de norte a sur, con límite en el paralelo 35º S. El área de muestreo del presente estudio se ubica sobre el paralelo 27° S, y se encuentra claramente dentro de la, denominada por los varios autores como, “zona de saturación de abejas africanizadas” (Kerr et al. 1982, Agra 2018, Porrini et al. 2020), lo cual resulta consistente con el predominio del componente africano observado en los análisis morfométricos.
Diversos autores han señalado que el éxito ecológico de las abejas africanizadas en regiones tropicales y subtropicales podría estar asociado a una serie de características adaptativas vinculadas a su origen genético. En este sentido, De Jong (1996) destaca que las abejas africanizadas, derivadas principalmente de A. m. scutellata, constituyen poblaciones preadaptadas evolutivamente a climas más cálidos, secos y ambientalmente rigurosos. Además, presentan rasgos biológicos que favorecen su desempeño en estos ambientes, tales como una mayor capacidad reproductiva, elevada eficiencia en el aprovechamiento de recursos florales y mayor tolerancia a altas temperaturas (Guzmán-Novoa et al. 2011). Esta preadaptación a condiciones tropicales y subtropicales explicaría su rápido crecimiento poblacional, su elevada capacidad de colonización y su éxito competitivo frente a abejas europeas. Estas características adquieren especial relevancia en regiones como el Chaco Húmedo, donde predominan temperaturas elevadas, marcada estacionalidad en la oferta floral y eventos climáticos extremos (Morello et al. 2012). Las condiciones ecológicas propias de esta ecorregión podrían favorecer la persistencia de genotipos africanos que se encuentran mejor adaptados a este tipo de ambientes, reforzando la hipótesis de un proceso de selección ambiental que mantiene altos niveles de africanización en regiones cálidas del norte argentino.
Además de los rasgos ecológicos y productivos, el origen genético de las colonias se ha asociado con rasgos diferenciales en comportamientos sanitarios y resistencia a patógenos (Maggi et al. 2016). Mecanismos como el comportamiento higiénico, el grooming, la supresión de la reproducción del ácaro y características del ciclo de cría de la abeja, contribuyen a la resistencia frente a Varroa destructor (Mondet et al. 2020), mientras que Guzmán-Novoa et al. (2011, 2024) destacan que numerosas poblaciones latinoamericanas sobrevivientes a Varroa presentan un importante componente africano, potencialmente asociado a la expresión de rasgos adaptativos vinculados con la resistencia. Poblaciones con mayor influencia africana evidencian una relación positiva entre el grado de africanización y la manifestación de rasgos sanitarios (Martin y Medina 2004, Moposita et al. 2020), así como menores niveles de infestación por Varroa en comparación con híbridos de origen europeo (Nganso et al. 2017). Por su parte, Pérez-Morfi et al. (2023) demostraron que la respuesta frente a infecciones provocadas por el género Nosema, no depende únicamente de factores ambientales o nutricionales, sino que está fuertemente condicionada por el trasfondo genético de las colonias. En base a estos antecedentes, futuros estudios podrían analizar el potencial de estos ecotipos de abejas en su capacidad de resistir el desarrollo de patologías apícolas.
El análisis temporal permitió identificar variaciones leves en las distancias de Mahalanobis entre los diferentes momentos de muestreo, observándose fluctuaciones a lo largo de las estaciones dentro de cada año. De manera complementaria, también se registraron diferencias entre los valores observados en 2024 y 2025, lo que sugiere la existencia de una variación interanual en la composición morfométrica de las poblaciones analizadas, aun cuando la estructura general de afinidad entre subespecies se mantuvo consistente. Estos resultados sugieren que, si bien las poblaciones estudiadas presentan una marcada predominancia de componentes africanizados, la estructura morfológica asociada a la hibridación no permanece completamente estática, sino que puede experimentar fluctuaciones temporales de baja magnitud a lo largo del tiempo. Estudios realizados en el centro de Argentina han evidenciado que las áreas de congregación de zánganos son reservorios de mayor diversidad genética y potenciales nodos de mezcla entre linajes europeos y africanizados (Galindo Cardona et al. 2020). Estos resultados sugieren que las poblaciones de abejas presentan una estructura genética dinámica, con potencial variación temporal vinculada al intercambio genético entre colonias manejadas y ferales. Para la provincia de Buenos Aires, Genchi García et al. (2018) evidenciaron variaciones en la frecuencia de linajes mitocondriales africanos y europeos respecto de relevamientos previos, sugiriendo la estructura genética de las poblaciones pueden modificarse a lo largo del tiempo. En este sentido, el seguimiento realizado en el presente estudio aporta evidencia empírica sobre la variabilidad temporal de la afinidad morfométrica en poblaciones del Chaco Húmedo, una dimensión que ha sido escasamente abordada en estudios previos en Argentina.
Estudios recientes, que analizan la estructura genética de poblaciones apícolas argentinas desde una perspectiva regional, (Litvinoff et al. 2023, Genchi García 2025) enfatizan la necesidad de generar información local que permita comprender mejor las particularidades regionales y optimizar las estrategias de manejo apícola.
La evidencia bibliográfica disponible sugiere que las poblaciones de abejas del Chaco Húmedo integran el complejo genético africanizado ampliamente distribuido en Sudamérica, donde la predominancia de linajes de origen africano se combina con distintos grados de introgresión de subespecies europeas. Este patrón refleja tanto la historia evolutiva reciente de A. mellifera en el continente como los procesos de expansión, hibridación y adaptación que siguieron a su establecimiento.
La alta frecuencia de este componente genético, tanto en colonias ferales como en apiarios comerciales, evidencia una dinámica sostenida de flujo génico y una adaptación consistente generando un escenario poblacional relativamente estable, en la que el acervo africanizado constituye la base genética predominante.
En consecuencia, resulta estratégico orientar futuras investigaciones y prácticas de manejo hacia esquemas de selección que valoricen y optimicen la genética local adaptada. Que integren criterios productivos y sanitarios con el fin de fortalecer la resiliencia y competitividad de los sistemas apícolas en consonancia con las condiciones ecológicas propias del Chaco Húmedo.
Limitaciones del estudio. Los resultados obtenidos deben interpretarse dentro de un marco de alcance restringido. El número de apiarios evaluados resulta limitado para capturar la heterogeneidad espacial del sistema, lo que reduce la capacidad de generalización de los patrones observados. De igual manera, el período de estudio puede no ser suficiente para abarcar la variabilidad temporal inherente a los sistemas ecológicos y productivos, especialmente en contextos sujetos a fluctuaciones ambientales. En consecuencia, las inferencias derivadas de este trabajo deben considerarse como aproximaciones contextuales, cuya extrapolación a otras regiones o escalas temporales requiere ser realizada con cautela. Para futuras investigaciones se debería ampliar tanto la cobertura geográfica como la duración del monitoreo, a fin de robustecer la validez externa y la consistencia de los resultados.
Agradecimientos. A Daniel Codutti, productor y encargado del apiario de la Unidad Demostrativa Apícola (UDA), a Fabián González, docente y encargado del apiario de la Escuela de la Familia Agrícola (EFA). A Tomás Larroquette por la edición de las figuras.
Contribución de los autores. MCI: Conceptualización, investigación, redacción de borrador original, revisión y edición. SLCR: Supervisión, redacción de borrador original, gestión de fondos. PLP, MMD: Revisión y edición.
Declaración de conflictos de intereses. Los autores declaran no tener conflictos de intereses financieros ni relaciones personales conocidas que pudieran haber influido en el trabajo presentado en este artículo.
Disponibilidad de datos. Los datos estarán disponibles previa solicitud.
 cimazepa@gmail.com